Durante miles de millones de años, la Tierra estuvo dominada exclusivamente por microorganismos unicelulares simples: bacterias y arqueas carentes de núcleo definido. Sin embargo, en algún momento de este vasto pasado, un salto evolutivo sin precedentes dio origen a las células eucariotas, las unidades complejas que hoy forman plantas, animales, hongos y protozoos.
¿Cómo se produjo este monumental paso hacia la complejidad? La respuesta moderna a este enigma combina la histórica teoría endosimbiótica —popularizada por la bióloga Lynn Margulis— con los descubrimientos más punteros de la genómica y la biología molecular. Hoy sabemos que no nos enfrentamos a una simple conjetura, sino a un hecho respaldado por una abrumadora huella genética y bioquímica.
¿Qué es la teoría endosimbiótica y por qué revolucionó la biología?
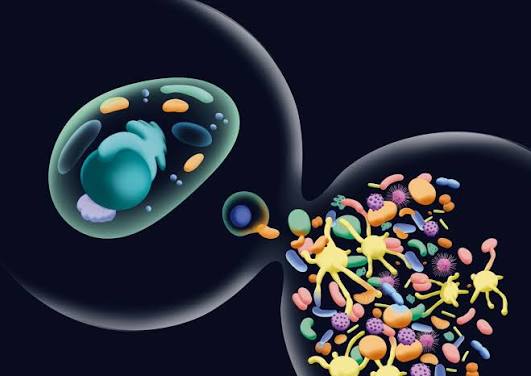
Propuesta formalmente en la segunda mitad del siglo XX, la teoría endosimbiótica postula que los orgánulos clave de las células eucariotas, en especial las mitocondrias (encargadas de la respiración celular y la producción de energía) y los cloroplastos (responsables de la fotosíntesis), fueron en su origen bacterias independientes.
En lugar de ser digeridas tras ser fagocitadas por una célula hospedadora ancestral, estas bacterias establecieron una relación simbiótica de beneficio mutuo. Con el tiempo, gran parte de su material genético original migró hacia el núcleo de la célula anfitriona, convirtiéndolos en orgánulos permanentes e indispensables.
Las cuatro grandes evidencias moleculares de la endosimbiosis
La biología molecular actual permite leer el ADN y las proteínas como si fueran archivos históricos. Las pruebas que demuestran el origen bacteriano de mitocondrias y cloroplastos son irrefutables:
-Genomas circulares y genes bacterianos: Las mitocondrias y los cloroplastos conservan su propio ADN, el cual es circular, exactamente igual al de las bacterias, a diferencia del ADN lineal presente en el núcleo eucariota. Al secuenciar este ADN, los científicos descubrieron que sus genes están emparentados directamente con las alfaproteobacterias (en el caso de las mitocondrias) y con las cianobacterias (en el de los cloroplastos).
-Ribosomas de tamaño bacteriano (70S): La maquinaria de síntesis de proteínas dentro de las mitocondrias y los cloroplastos se parece mucho más a la de las bacterias (ribosomas 70S) que a la del citoplasma de la célula eucariota que los alberga (ribosomas 80S). Como prueba definitiva, ciertos antibióticos diseñados para bloquear los ribosomas bacterianos también inhiben la síntesis proteica mitocondrial, sin afectar al resto de la célula huésped.
-Composición química de las membranas: La membrana interna de las mitocondrias contiene cardiolipina, un fosfolípido exclusivo de las membranas bacterianas que rara vez se encuentra en las membranas de las células eucariotas convencionales.
-Sistemas de transporte especializados: Las proteínas encargadas de importar moléculas hacia el interior de la mitocondria (los complejos de translocación TOM y TIM) derivan directamente de los sistemas de transporte que utilizaban las bacterias ancestrales para atravesar sus propias envolturas celulares.
El giro moderno: Las arqueas Asgard y la identidad del hospedador
Durante décadas, uno de los mayores misterios de la evolución celular fue identificar al anfitrión original: ¿qué tipo de organismo devoró a la bacteria que dio origen a la mitocondria?
La respuesta llegó gracias a la metagenómica marina y al descubrimiento de un superfilo de microorganismos extremófilos conocidos como arqueas Asgard (que incluyen grupos como Lokiarchaeota y Heimdallarchaeota).
El análisis molecular de estas arqueas reveló un dato fascinante: poseen genes que hasta ahora se consideraban exclusivos de los eucariotas, tales como componentes del citoesqueleto de actina y proteínas del sistema de gestión de membranas (ESCRT). Esto demuestra que el hospedador original no era una bacteria simple, sino una arquea compleja y ya preadaptada para interactuar íntimamente con otros microbios.